

シャコのパンチ、アリの顎、カメレオンの舌、そしてゴブリンシャークの飛び出す顎。動物の捕食や攻撃には、「一瞬」「超高速」と表現される動きが数多くあります。しかし、秒速何mなのか、どれほど急激に加速するのか、動きが始まってから終わるまで何秒かかるのかは、それぞれ別の話です。
そこでロザニカでは、捕食・攻撃時に身体の一部を高速で動かす動物について査読論文を中心に調査し、17種・19の運動レコードを独自データセットとして整理しました。論文ごとに異なる数値を速度・加速度・動作時間に分け、一部のグループについては、公開された顎の長さと速度から「顎の長さに対してどれほど速く動いているか」も同じ式で再計算しています。
調べてみると、単純な最高速度では100m/sを超える動きがある一方、速度では及ばなくても桁違いの加速度を示す攻撃もありました。さらに、私たちが「一瞬」と感じる動きの中にも、数十マイクロ秒で終わるものから数十ミリ秒を使うものまで大きな差があります。今回のデータから見えてきたのは、「最速の動物」を一つ決めることよりも、動物たちがそれぞれ異なる方法で“速さ”を作り出しているという事実でした。
同じ「高速攻撃」を17種19レコードにそろえてみた
今回の調査では、走る、泳ぐ、飛ぶといった全身の移動速度ではなく、獲物や敵に対して顎・舌・付属肢・頭部などを高速で動かす運動を対象にしました。毒液や水など体外へ放出された物質の速度、逃避のためのジャンプは含めていません。また、二次記事に数字が書かれていても、元となる研究で数値を確認できないものは主要データから外しました。
対象には、トラップジョーアリ属 Odontomachus 8種、ドラキュラアリ Mystrium camillae、シロアリ Pericapritermes nitobei、ピーコック・マンティスシュリンプ Odontodactylus scyllarus、カメレオン Rhampholeon spinosus、サンショウウオ Bolitoglossa dofleini、ヒョウガエル Rana pipiens、ナンブヒキガエル Bufo terrestris、ゴブリンシャーク Mitsukurina owstoni、モハーベガラガラヘビ Crotalus scutulatus を含めました [1]〜[10]。同じ種でも、ドラキュラアリでは働きアリのサイズ階級、ゴブリンシャークでは上顎と下顎の運動を分けて記録したため、17種に対して19レコードとなっています。
今回の調べ方
各研究から、対象種、動かす部位、攻撃方式、代表速度、加速度、動作時間、測定条件、値が「単一の最大値」なのか「複数個体の最大値の平均」なのかを抽出しました。速度はm/s、加速度はm/s²、時間は必要に応じてmsまたはµsへ統一しています。論文に記載がない項目は推定せず、欠損のまま扱いました。
特に注意したのが「最大速度」の意味です。例えば、Odontomachus 8種の研究では種ごとに「観測された最大速度」と「各個体の最大速度を平均した値」の両方が掲載されています [2]。一方、別の研究では特定の1回の運動から得たピーク値が示されることもあります。数字だけを抜き出して同じランキングにすると条件が崩れるため、本記事では可能な限り値の種類を区別しました。Odontomachus の測定には70,000〜100,000fpsの高速度撮影が使われています [2]。
表1:ロザニカが整理した高速攻撃データセットの主要値
| 対象 | 運動 | 代表的な速度 | 最大・代表加速度 | 動作時間の目安 |
|---|---|---|---|---|
| Pericapritermes nitobei | 顎のスナップ | 最大132.4 m/s | ― | 21.7〜43.4 µs |
| Mystrium camillae minor | 顎のスナップ | 93.3 ± 14.5 m/s | 1.45×10⁷ m/s² | 14.6 ± 2.1 µs |
| Odontomachus 8種 | 顎の閉鎖 | 平均最大35.9〜48.8 m/s | 8.73×10⁵〜1.74×10⁶ m/s² | O. bauriで平均0.13 ms |
| Odontodactylus scyllarus | 捕脚の打撃 | 14〜23 m/s | 最大104,000 m/s² | 約2.7 ms |
| Bolitoglossa | 舌射出 | 最大7.032 m/s | 最大4,492 m/s² | すべて20 ms未満 |
| Rhampholeon spinosus | 舌射出 | 最大5.32 m/s | 最大2,590 m/s² | ― |
| Mitsukurina owstoni | 下顎突出 | 最大3.14 m/s | ― | shooting stage 約93 ms |
| Rana pipiens | 舌射出 | 最大3.23 m/s | 最大449 m/s² | 17〜92 ms |
| Crotalus scutulatus | 捕食ストライク | 平均最大3.27 m/s | 平均最大125 m/s² | ― |
※数値の統計的意味は研究ごとに異なります。単純な順位表ではありません。データは原著研究 [1]〜[10] をもとにロザニカ編集部が共通項目へ整理しました。
132.4m/sの顎――絶対速度では小さな節足動物が突出した
今回確認した中で、特に大きな絶対速度が記録されていたのは、アリやシロアリの顎でした。P. nitobei の兵アリならぬ兵シロアリでは、超高速撮影された2個体の顎先端が89.7m/sと132.4m/sに達しました。ピーク速度に到達したのは動き始めて8.68µs後で、顎の滑動そのものも21.7〜43.4µsで終了しています [3]。別に行われた15個体92イベントの実験では、各個体の最大値を用いた速度が平均80.3 ± 15.9m/sでした。
ドラキュラアリ M. camillae も同じ桁です。小型のminor workerでは、顎のピーク線速度が平均93.3 ± 14.5m/s、動作時間は14.6 ± 2.1µsでした [4]。さらに Odontomachus 8種を同じ方法で比較した研究では、観測された最大速度が48.3〜66.5m/s、種ごとの平均最大速度が35.9〜48.8m/sに分布しています [2]。2006年に詳しく調べられた O. bauri では、捕食時の顎が35〜64m/sで閉じ、平均0.13msで動作を終えています [1]。
一方、脊椎動物を見ると数値のスケールが変わります。プレソドン科サンショウウオの Bolitoglossa では舌の最大速度7.032m/s、カメレオン R. spinosus では最大5.32m/s、ゴブリンシャークでは下顎の突出速度が最大3.14m/sでした [5][6][7]。モハーベガラガラヘビが野外でマウスへ行った17回の捕食ストライクでは、最大速度の平均が3.27m/sでした [10]。
図1:高速攻撃の「速度」を同じm/sで並べる
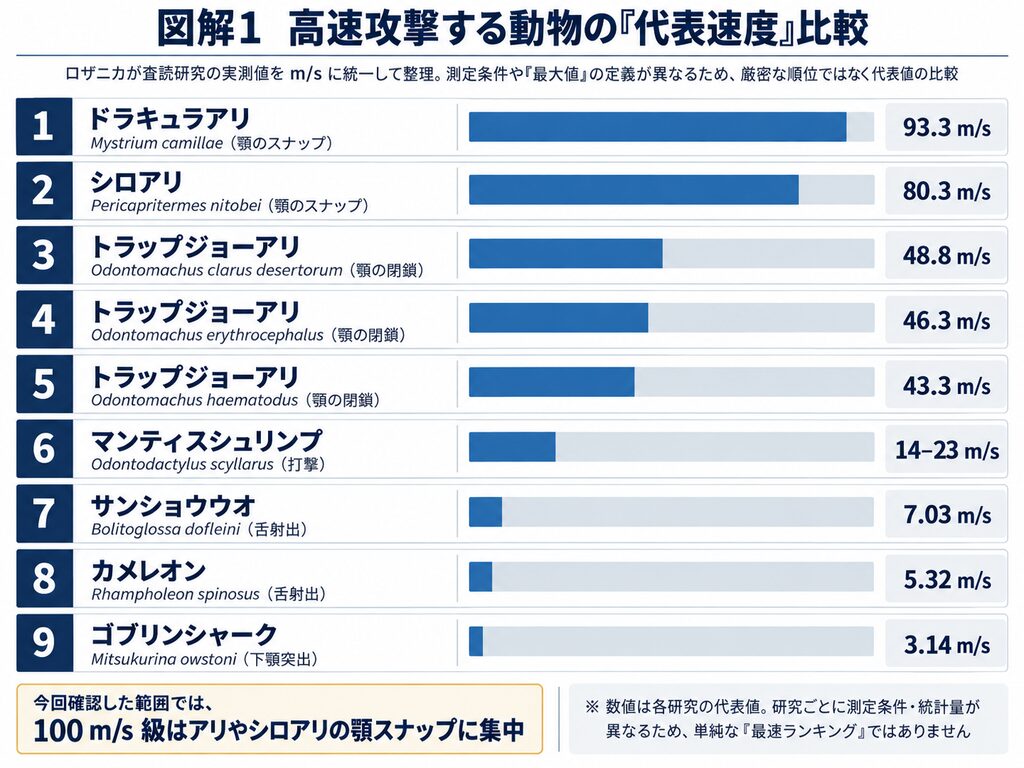
ただし、ここから「シロアリがゴブリンシャークより40倍優れた捕食者だ」といった結論は出せません。移動距離も身体サイズも攻撃対象もまったく違います。m/sは速さの一面しか測っていないからです。
速度で負けても加速度では別世界――シャコのパンチが示すもう一つの「速さ」
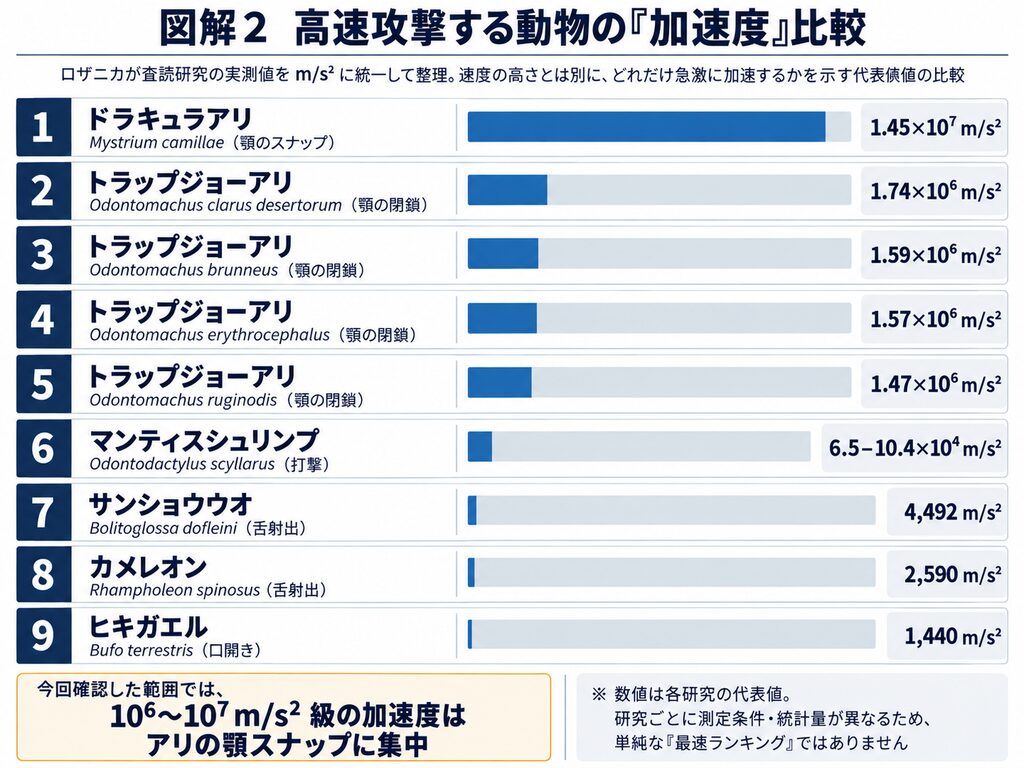
ピーコック・マンティスシュリンプの打撃速度は14〜23m/sです [8]。顎を数十m/s以上で動かすアリと比べれば、一見するとそれほど極端ではありません。ところがピーク加速度は65,000〜104,000m/s²に達し、打撃は約2.7msで行われます。研究では、捕脚にエネルギーを蓄えて一気に解放するバネ状の機構が、この動きを成立させていると説明されています [8]。
さらに桁が上がるのが M. camillae です。minor workerの平均ピーク線加速度は1.45×10⁷m/s²でした [4]。Odontomachus 8種でも、平均最大加速度は8.73×10⁵〜1.74×10⁶m/s²に達します [2]。一方、今回確認した脊椎動物では、Bolitoglossa の舌射出が最大4,492m/s²、R. spinosus が最大2,590m/s²、R. pipiens が最大449m/s²でした [5][6][9]。
つまり今回のデータでは、「最高速度が高いこと」と「極端な加速度を出すこと」は完全には同じではありませんでした。数m/sしか出ていない動物でも、極めて短い距離・時間でその速度まで到達している場合があります。最高速度だけを並べると、この違いが消えてしまいます。
図2:速度と加速度を同時に見る
数十マイクロ秒と数十ミリ秒――人間には同じ「一瞬」でも1000倍違う
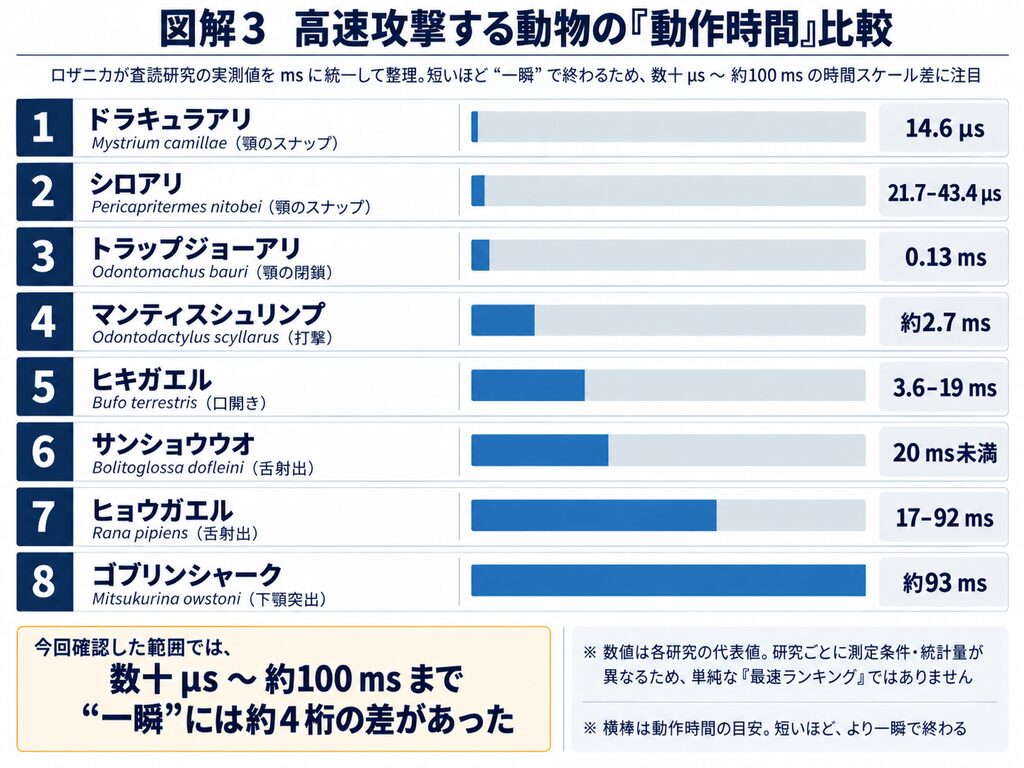
もう一つ、速度以上に直感とのずれが大きかったのが動作時間です。M. camillae minor workerの顎スナップは平均14.6µs、P. nitobei の顎の滑動は21.7〜43.4µsでした [3][4]。1msは1000µsですから、これらは1msのさらに数十分の1しかありません。O. bauri の捕食時の顎閉鎖も平均0.13msです [1]。
マンティスシュリンプになると約2.7ms、Bolitoglossa の舌射出はすべて20ms未満でした [5][8]。ヒョウガエル R. pipiens の舌射出は17〜92ms、ゴブリンシャークでは顎を急激に前方へ射出するshooting stageが146msから239msまで、つまり約93ms続きます [7][9]。
私たちの目にはどれも「一瞬の攻撃」に見えます。しかし14.6µsと93msでは、時間スケールは約6400倍違います。だからこそ、「一瞬で攻撃する」という表現だけでは、その動物がどのような運動能力を持っているのかはほとんど分かりません。
図3:攻撃が完了するまでの時間を同じ軸に置く
顎の大きさをそろえたら差はどう変わる?ロザニカ独自に再計算してみた
ここまでの比較には一つ大きな問題があります。長さ1mmほどのアリの顎と、大型動物の顎や舌を、そのままm/sだけで比べてよいのでしょうか。
当初は17種すべてについて「体長/秒」を計算することも検討しました。しかし、速度を測定した個体と対応する体長を同じ条件で確認できない研究が複数ありました。別の資料から典型的な体長を持ってきて割れば数字自体は作れますが、それでは比較精度が落ちます。そこで今回は無理に全種へ広げず、同じ研究内で顎長と代表速度を確認できたスナップジョー系10対象だけについて再計算しました。
計算方法は単純です。論文に掲載された代表ピーク速度を、平均顎長をmに換算した値で割りました。例えば M. camillae minor workerでは、平均顎長0.844mm、代表ピーク速度93.3m/sです [4]。93.3 ÷ 0.000844 ≒ 110,545となります。この値は「1秒間ずっと11万回分の顎長を移動する」という意味ではありません。瞬間的なピーク速度を顎の長さで規格化した、今回の比較用指標です。
表2:ロザニカ独自計算「顎長換算ピーク速度」
| 対象 | 使用した代表速度 | 平均顎長 | 顎長換算ピーク速度 |
|---|---|---|---|
| Mystrium camillae minor | 93.3 m/s | 0.844 mm | 約110,500 顎長/秒相当 |
| Pericapritermes nitobei | 80.3 m/s | 1.06 mm | 約75,800 |
| Odontomachus haematodus | 43.3 m/s | 1.16 mm | 約37,300 |
| O. clarus desertorum | 48.8 m/s | 1.32 mm | 約37,000 |
| O. brunneus | 41.5 m/s | 1.16 mm | 約35,800 |
| O. ruginodis | 36.5 m/s | 1.10 mm | 約33,200 |
| O. bauri | 38.3 m/s | 1.29 mm | 約29,700 |
| O. erythrocephalus | 46.3 m/s | 1.58 mm | 約29,300 |
| O. cephalotes | 37.1 m/s | 1.60 mm | 約23,200 |
| O. chelifer | 35.9 m/s | 2.15 mm | 約16,700 |
※公開された平均顎長と代表速度をもとにロザニカ編集部が算出。小数第1位以下の元データを用い、最終値は概数に丸めました。Odontomachus 8種の顎長・速度は同一研究のTable 3、M. camillae と P. nitobei もそれぞれ同一研究内の値を使用しています [2][3][4]。
この換算では、Odontomachus 8種が約1万6700〜3万7300顎長/秒相当だったのに対し、M. camillae minor workerは約11万500でした。Odontomachus 8種の中で最も高かった値と比べても約3倍です。P. nitobei も約7万5800で、同じ比較では約2倍でした。
この結果を「どのアリが優れているか」という順位として読むべきではありません。むしろ重要なのは、絶対速度だけでは分からない“自身の攻撃器官に対する相対的な速さ”も存在するという点です。異なる体格の動物を比較するなら、どの物差しを選ぶかで「速さ」の意味そのものが変わります。
「世界最速」を一つ決めなかった理由
今回の17種19レコードを見ると、シロアリの132.4m/s、ドラキュラアリの1.45×10⁷m/s²、数十µsで終了する顎スナップなど、極端な数字はいくつも見つかりました。しかし、ロザニカではこれらを使って「動物界最速ランキング」を作りませんでした。
最大の理由は、研究条件が完全にはそろっていないからです。Odontomachus の研究では70,000〜100,000fpsで撮影されていますが、P. nitobei の超高速測定では約46万fps、M. camillae でも約48万fps級の撮影が使われています [2][3][4]。極端に短い運動では、時間分解能が違えば捉えられるピーク値にも影響します。また、「1回だけ観測された最大値」と「複数個体の最大値を平均した値」を同じ順位に置くことにも問題があります。
さらに今回の17種は、動物界全体から無作為に抽出した標本ではありません。高速運動が研究されやすい動物が集まっているため、「節足動物は必ず脊椎動物より速い」と一般化することもできません。ただ、今回確認した範囲では、最も極端な速度・加速度・短時間運動の多くが、筋肉だけで直接動かすのではなく、事前に弾性エネルギーを蓄えて一気に解放する仕組みを持つ動物に集中していました。マンティスシュリンプ、トラップジョーアリ、ドラキュラアリ、カメレオンやサンショウウオの研究でも、こうした弾性機構やパワー増幅が重要なテーマとして扱われています [4][5][6][8]。
今回の調査から一つだけ「最速」を選ぶことはできませんでした。代わりに見えてきたのは、速度、加速度、動作時間、そして身体サイズに対する速さは、それぞれ別の性能だということです。100m/sを超える顎もあれば、最高速度そのものは低くても数千〜数万m/s²で加速する舌や打撃もあります。
動物の「速さ」は、一つの数字ではありません。何を速さとして測るのかを変えた瞬間、それまでとは別の動物が極端な存在として浮かび上がってきます。
参考文献
[1] Patek SN, Baio JE, Fisher BL, Suarez AV. Multifunctionality and mechanical origins: ballistic jaw propulsion in trap-jaw ants. Proc Natl Acad Sci U S A. 2006;103(34):12787-12792. DOI: 10.1073/pnas.0604290103.
[2] Spagna JC, Vakis AI, Schmidt CA, et al. Phylogeny, scaling, and the generation of extreme forces in trap-jaw ants. J Exp Biol. 2008;211(14):2358-2368. DOI: 10.1242/jeb.015263.
[3] Kuan KC, Chiu CI, Shih MC, Chi KJ, Li HF. Termite’s Twisted Mandible Presents Fast, Powerful, and Precise Strikes. Sci Rep. 2020;10:9462. DOI: 10.1038/s41598-020-66294-1.
[4] Larabee FJ, Smith AA, Suarez AV. Snap-jaw morphology is specialized for high-speed power amplification in the Dracula ant, Mystrium camillae. R Soc Open Sci. 2018;5(12):181447. DOI: 10.1098/rsos.181447.
[5] Deban SM, O’Reilly JC, Dicke U, van Leeuwen JL. Extremely high-power tongue projection in plethodontid salamanders. J Exp Biol. 2007;210:655-667. DOI: 10.1242/jeb.02664.
[6] Anderson CV. Off like a shot: scaling of ballistic tongue projection reveals extremely high performance in small chameleons. Sci Rep. 2016;6:18625. DOI: 10.1038/srep18625.
[7] Nakaya K, Tomita T, Suda K, et al. Slingshot feeding of the goblin shark Mitsukurina owstoni. Sci Rep. 2016;6:27786. DOI: 10.1038/srep27786.
[8] Patek SN, Korff WL, Caldwell RL. Deadly strike mechanism of a mantis shrimp. Nature. 2004;428:819-820. DOI: 10.1038/428819a.
[9] Sandusky PE, Deban SM. Temperature effects on the biomechanics of prey capture in the frog Rana pipiens. J Exp Zool A Ecol Genet Physiol. 2012;317(10):595-607. DOI: 10.1002/jez.1751.
[10] Whitford MD, Freymiller GA, Higham TE, Clark RW. The Effects of Temperature on the Kinematics of Rattlesnake Predatory Strikes in Both Captive and Field Environments. Integr Org Biol. 2020;2(1):obaa025. DOI: 10.1093/iob/obaa025.
[11] Deban SM, Lappin AK. Thermal effects on the dynamics and motor control of ballistic prey capture in toads: maintaining high performance at low temperature. J Exp Biol. 2011;214:1333-1346. DOI: 10.1242/jeb.048405.